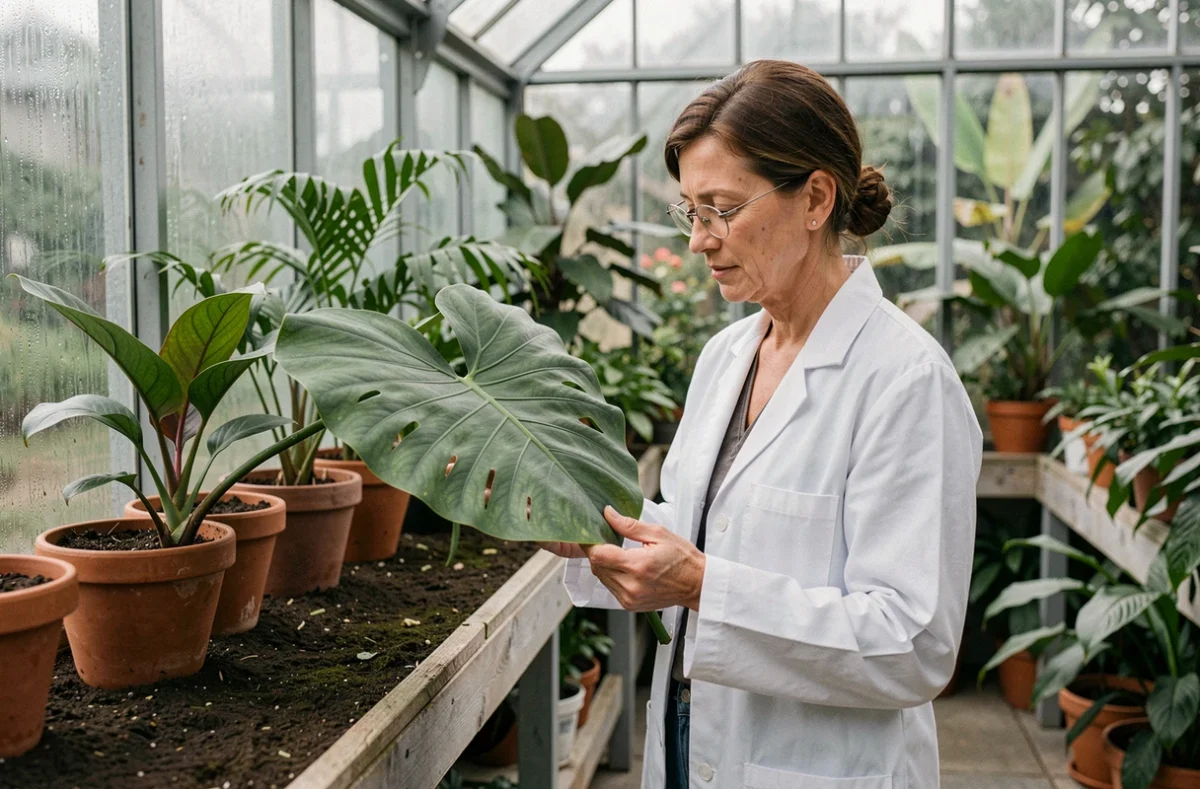
Atmosphärisches CO₂ ist das Kohlenstoffsubstrat der Photosynthese. Ohne CO₂ kommt der Calvin-Zyklus zum Erliegen, Rubisco hat nichts zu fixieren und die Pflanze stellt die Produktion von Triosephosphaten ein. Wer versteht, wie dieses Gas aufgenommen und assimiliert wird und wann es zum limitierenden Faktor werden kann, kann die Reaktionen von Pflanzen auf Veränderungen der atmosphärischen CO₂-Konzentration besser einordnen.
Rubisco und CO₂-Fixierung: Der oft unterschätzte Sättigungspunkt
Die Ribulose-1,5-bisphosphat-Carboxylase/Oxygenase (Rubisco) katalysiert die Carboxylierung von RuBP zu zwei Molekülen 3-Phosphoglycerat. Das Enzym wirkt zugleich als Oxygenase, wodurch Photorespiration entsteht. Das CO₂/O₂-Verhältnis am aktiven Zentrum der Rubisco bestimmt die Nettoeffizienz der Fixierung.
Steigt die CO₂-Konzentration rund um das Blatt, wird die Carboxylierungsreaktion gegenüber der Oxygenierung begünstigt. Die Netto-Photosynthese nimmt zu, allerdings nicht linear. Ab einem bestimmten Schwellenwert wird die Regeneration von RuBP durch die photochemische Phase zum limitierenden Faktor: Licht und Elektronentransportkette begrenzen die Bereitstellung von ATP und NADPH.
Freilandversuche (FACE-Anlagen) mit Soja und Pappeln haben einen Anstieg der Photosynthese bei erhöhter CO₂-Konzentration bestätigt. Bei mehreren Arten wurde im Laufe der Zeit jedoch eine Abnahme der Fähigkeit von Rubisco, Kohlenstoff zu fixieren beobachtet. Die Pflanze passt die Menge oder Aktivität dieses Enzyms an – ein Phänomen, das als photosynthetische Akklimatisation bezeichnet wird. Die Reaktion hängt von der Art, der Dauer der Exposition und den Anbaubedingungen ab.
Wer verstehen möchte, welche Rolle CO₂ in einer Pflanze spielt, sollte sich daher nicht mit der vereinfachten Gleichung CO₂ + H₂O + Licht = Glucose + O₂ begnügen. Das Schlüsselenzym selbst kann zum biologischen Engpass werden.
Spaltöffnungen und CO₂: Der Wasserkonflikt als Grenze der Photosynthese
Spaltöffnungen sind das Einfallstor für CO₂ ins Blattmesophyll. Durch diese Poren diffundiert das Gas zu den Chloroplasten, zugleich sind sie aber auch der wichtigste Weg, über den die Pflanze durch Transpiration Wasserdampf verliert. Die Pflanze muss ständig zwischen Kohlenstoffaufnahme und Schutz vor Austrocknung abwägen.
Steigt die CO₂-Konzentration außerhalb des Blatts, nimmt die stomatäre Leitfähigkeit tendenziell ab: Das Blatt kann auch bei geringerer Öffnung ausreichend Kohlenstoff fixieren. Die Transpiration sinkt, wodurch sich die Wassernutzungseffizienz verbessert. Bei Trockenheit schützt das Schließen der Spaltöffnungen die Pflanze vor Wasserstress, unterbricht aber zugleich die CO₂-Zufuhr und verringert so die Netto-Photosynthese.
Dieser Zielkonflikt erklärt, warum eine CO₂-angereicherte Atmosphäre einer gut bewässerten Pflanze nicht in gleicher Weise zugutekommt wie einer Pflanze, die unter Wassermangel leidet. Im Freiland stößt der theoretische Photosynthesegewinn an die Grenzen der tatsächlichen Wasserbilanz des Blatts.
CO₂-Signalübertragung in den Spaltöffnungen
Die CO₂-Erkennung durch die Schließzellen der Spaltöffnungen setzt Signalkaskaden in Gang, an denen Kinasen und Ionenkanäle beteiligt sind. Die aktuelle Forschung zielt darauf ab, Rezeptoren und molekulare Signalwege zu identifizieren, die die interne CO₂-Konzentration in ein Signal zum Öffnen oder Schließen der Spaltöffnungen umwandeln. Eine Veränderung dieser Mechanismen könnte es langfristig ermöglichen, die CO₂-Aufnahme teilweise vom Wasserverlust zu entkoppeln.
Viel CO₂, aber zu wenig Stickstoff oder Wasser: Die tatsächlichen Grenzen der Kohlenstoffdüngung
Ein in populärwissenschaftlichen Artikeln häufig unterschätzter Aspekt sind limitierende Kofaktoren. Mehr verfügbares CO₂ reicht nicht aus, wenn andere Ressourcen fehlen.
- FACE-Versuche auf Grünland haben gezeigt, dass die Wachstumsreaktion auf eine CO₂-Anreicherung vom verfügbaren Stickstoff im Boden abhängt. Bei unzureichender Stickstoffversorgung stagniert die Biomassesteigerung oder bleibt ganz aus.
- Stickstofffixierende Leguminosen im Ökosystem können diese Reaktion verändern: Indem sie die Bioverfügbarkeit von Stickstoff erhöhen, ermöglichen sie benachbarten Arten, den CO₂-Überschuss besser zu nutzen.
- Eine Studie zur Macaubapalme untersuchte die Kombination aus erhöhter CO₂-Konzentration und Trockenheit. Wasserstress verringert die stomatäre Leitfähigkeit so stark, dass der Nutzen einer höheren CO₂-Konzentration teilweise aufgehoben wird.
Ein CO₂-Überschuss ohne Wasser und Stickstoff steigert die Photosynthese nur vorübergehend. Der Kohlenstoffstoffwechsel ist auf Stickstoffgerüste für die Proteinsynthese (einschließlich Rubisco) und auf Wasser angewiesen, um den Turgor der Zellen und die Transpiration aufrechtzuerhalten.
Nährstoffqualität von Nutzpflanzen bei erhöhter CO₂-Konzentration
Ein in Frontiers in Nutrition veröffentlichter Übersichtsartikel berichtet, dass eine erhöhte Kohlenstoffassimilation bei hoher CO₂-Konzentration mit einer Veränderung der Mineralstoffzusammensetzung von Nutzpflanzen einhergehen kann. Der Gehalt bestimmter Nährstoffe in Körnern und Blättern nimmt tendenziell ab. Eine gesteigerte Photosynthese bedeutet also nicht automatisch nährstoffreichere Lebensmittel. Dieses Ergebnis relativiert die Annahme, eine CO₂-Anreicherung der Atmosphäre würde den Nährwert der Ernte zwangsläufig verbessern.
Calvin-Zyklus und Verteilung des fixierten Kohlenstoffs
Nach der Fixierung des CO₂ durch Rubisco gelangt 3-Phosphoglycerat in den Calvin-Zyklus, wo es mithilfe von ATP und NADPH aus der Lichtreaktion zu Glycerinaldehyd-3-phosphat (G3P) reduziert wird. Der größte Teil des G3P dient der Regeneration von RuBP, damit der Zyklus weiterlaufen kann; nur ein kleiner Nettoanteil wird in Form von Triosephosphaten ins Cytoplasma exportiert.
Diese Triosephosphate dienen der Saccharosesynthese (Saccharose wird über das Phloem transportiert) oder werden im Chloroplasten in vorübergehend gespeicherte Stärke umgewandelt. Die Verteilung zwischen Saccharose und Stärke hängt vom Bedarf der Senkenorgane ab (Wurzeln, Früchte, Meristeme). Sind die Senken gesättigt oder wird anorganisches Phosphat nicht schnell genug recycelt, verlangsamt sich der Calvin-Zyklus durch Rückkopplungshemmung.
Diese fein abgestimmte Regulation erklärt, warum eine Verdopplung des CO₂-Gehalts der Umgebungsluft den Biomasseertrag niemals verdoppelt. Der fixierte Kohlenstoff muss in den Stoffwechsel eingebunden werden; andernfalls senkt die Pflanze ihre Assimilationsrate selbst. Hier zeigt sich dasselbe Muster wie bei Stickstoff und Wasser: Jedes Glied der Kette kann zum limitierenden Faktor werden.
Die Rolle von CO₂ bei der Photosynthese geht weit über die bloße Bereitstellung von Kohlenstoffatomen hinaus. Sie umfasst die Regulation der Spaltöffnungen, die Enzymaktivität von Rubisco, die Verfügbarkeit von Stickstoff und Wasser sowie die Verteilung des Kohlenstoffs auf die verschiedenen Organe. Wer nur einen dieser Faktoren isoliert betrachtet, erhält ein unvollständiges Bild der pflanzlichen Funktionsweise.